La trasduzione del segnale cellulare è l’insieme dei processi attraverso i quali le cellule percepiscono stimoli provenienti dall’ambiente esterno o da altre cellule e li convertono in risposte biologiche specifiche. Questo meccanismo rappresenta uno degli aspetti fondamentali della biologia cellulare, poiché consente agli organismi viventi di adattarsi ai cambiamenti dell’ambiente, coordinare funzioni fisiologiche e mantenere l’omeostasi.
Gli stimoli che attivano i sistemi di segnalazione possono essere di natura molto diversa e includono ormoni, neurotrasmettitori, fattori di crescita, citochine, segnali metabolici e stimoli fisici come luce, temperatura o stress meccanico. Quando queste molecole segnale, spesso chiamate ligandi, si legano a specifiche proteine recettoriali, si avvia una cascata di eventi molecolari che porta alla trasformazione del segnale extracellulare in una risposta intracellulare.
La trasduzione del segnale si basa su una complessa rete di recettori di membrana o intracellulari, proteine adattatrici, enzimi, secondi messaggeri e fattori di trascrizione, che cooperano per trasmettere e modulare l’informazione all’interno della cellula. Attraverso queste vie di segnalazione, il segnale iniziale può essere amplificato, integrato con altri segnali e regolato con grande precisione, consentendo risposte cellulari altamente specifiche.
I processi di trasduzione del segnale controllano numerose funzioni biologiche essenziali, tra cui proliferazione cellulare, differenziamento, metabolismo, secrezione, risposta immunitaria e morte cellulare programmata (apoptosi). Alterazioni in questi meccanismi possono contribuire allo sviluppo di diverse patologie, tra cui tumori, malattie metaboliche e disturbi cardiovascolari, rendendo le vie di segnalazione cellulare importanti bersagli della ricerca farmacologica.
Principi generali della trasduzione del segnale cellulare
La trasduzione del segnale cellulare si basa su una serie di meccanismi molecolari attraverso i quali un segnale extracellulare viene riconosciuto, trasmesso e trasformato in una risposta biologica specifica all’interno della cellula. Questo processo avviene attraverso una sequenza coordinata di eventi che coinvolgono recettori, proteine di segnalazione, enzimi e secondi messaggeri, organizzati in vere e proprie cascate di segnalazione.
Riconoscimento del segnale

cascate di segnalazione
Un primo principio fondamentale della trasduzione del segnale è il riconoscimento del segnale. Le cellule possiedono proteine specializzate, chiamate recettori, in grado di legare selettivamente specifiche molecole segnale o ligandi. Questi recettori possono trovarsi sulla membrana plasmatica, quando il ligando è idrofilo e non può attraversare il doppio strato lipidico, oppure all’interno della cellula, nel citoplasma o nel nucleo, nel caso di molecole lipofile come gli ormoni steroidei.
Attivazione del recettore
Dopo il legame ligando-recettore si verifica la trasduzione del segnale vera e propria, durante la quale il recettore attivato subisce cambiamenti conformazionali che permettono l’attivazione di proteine intracellulari o enzimi di segnalazione.
Questo porta alla formazione o al rilascio di secondi messaggeri intracellulari, piccole molecole diffusibili come AMP ciclico (cAMP), GMP ciclico (cGMP), calcio (Ca²⁺), inositolo trifosfato (IP₃) e diacilglicerolo (DAG), che amplificano e propagano il segnale all’interno della cellula.
Un aspetto caratteristico delle vie di trasduzione del segnale è infatti la forte amplificazione del segnale. L’attivazione di un singolo recettore può portare all’attivazione di numerose molecole effettrici a valle, generando una risposta cellulare significativa anche a partire da concentrazioni molto basse di ligando.
Un altro principio chiave è la specificità della risposta cellulare. Sebbene molte cellule possano essere esposte allo stesso segnale, la risposta dipende dal tipo di recettori espressi, dalle proteine di segnalazione presenti e dal contesto cellulare. Di conseguenza, uno stesso ligando può indurre effetti biologici differenti in tipi cellulari diversi.
Regolazione e terminazione del segnale
La trasduzione del segnale è inoltre caratterizzata da meccanismi di regolazione e terminazione del segnale, che impediscono un’attivazione eccessiva o prolungata delle vie di segnalazione. Questi includono degradazione dei secondi messaggeri, defosforilazione delle proteine coinvolte e desensibilizzazione dei recettori, processi essenziali per mantenere l’equilibrio delle funzioni cellulari.
Infine, le cellule possiedono la capacità di integrare simultaneamente più segnali, provenienti da diverse vie di segnalazione. Questa integrazione consente alla cellula di modulare la propria risposta in modo dinamico, adattandosi in modo preciso alle condizioni fisiologiche e ambientali.
Recettori coinvolti nella trasduzione del segnale cellulare
I recettori cellulari sono proteine specializzate che permettono alla cellula di riconoscere e rispondere a specifiche molecole segnale, avviando i processi di trasduzione del segnale. Essi funzionano come veri e propri sensori molecolari, in grado di rilevare la presenza di ligandi nell’ambiente extracellulare o intracellulare e di trasformare questa informazione in una risposta biochimica all’interno della cellula.
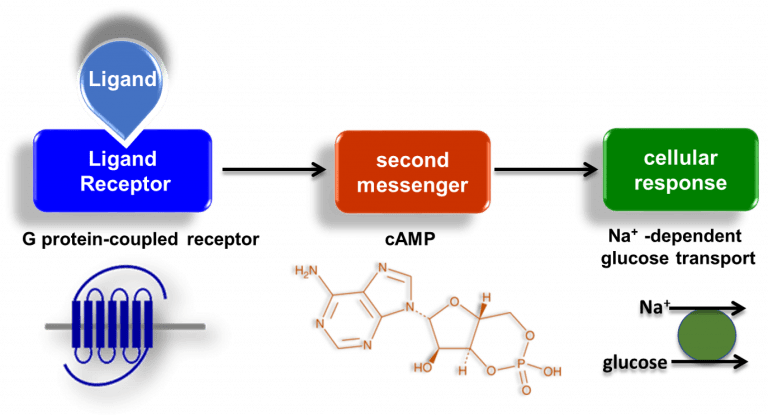
recettori della trasduzione del segnale cellulare
In base alla loro localizzazione e al meccanismo di azione, i recettori coinvolti nella trasduzione del segnale possono essere suddivisi in due grandi categorie: recettori di membrana e recettori intracellulari.
Recettori di membrana
I recettori di membrana sono proteine integrate nella membrana plasmatica che riconoscono ligandi idrofili o di grandi dimensioni, i quali non sono in grado di attraversare il doppio strato lipidico della membrana cellulare. Il legame tra ligando e recettore induce cambiamenti conformazionali nella proteina recettoriale, che portano all’attivazione di diverse vie di segnalazione intracellulare.
Tra i principali recettori di membrana coinvolti nella trasduzione del segnale si distinguono:
Recettori accoppiati a proteine G (GPCR)
I recettori accoppiati a proteine G costituiscono una delle più grandi famiglie di recettori cellulari. Dopo il legame con il ligando, questi recettori attivano proteine G eterotrimeriche, che a loro volta modulano l’attività di enzimi come adenilato ciclasi e fosfolipasi C, portando alla produzione di secondi messaggeri come cAMP, IP₃ e DAG.
Recettori tirosin-chinasi (RTK)
I recettori tirosin-chinasi sono coinvolti principalmente nella risposta a fattori di crescita e segnali proliferativi. Il legame del ligando induce dimerizzazione del recettore e autofosforilazione di residui di tirosina nel dominio citoplasmatico, creando siti di legame per diverse proteine di segnalazione e attivando importanti vie intracellulari, come la via MAPK e la via PI3K-Akt.
Recettori canale ionico
Alcuni recettori funzionano come canali ionici regolati da ligando. Il legame della molecola segnale provoca l’apertura del canale, permettendo il passaggio di ioni come Na⁺, K⁺, Ca²⁺ o Cl⁻ attraverso la membrana. Questo tipo di recettori è particolarmente importante nella trasmissione sinaptica nel sistema nervoso.
Recettori intracellulari
I recettori intracellulari si trovano nel citoplasma o nel nucleo e sono attivati da molecole segnale lipofile, che possono attraversare liberamente la membrana plasmatica. Tra queste molecole rientrano ormoni steroidei, ormoni tiroidei e alcune vitamine liposolubili.
Una volta legato il ligando, il recettore subisce cambiamenti strutturali che gli permettono di interagire direttamente con il DNA, agendo spesso come fattore di trascrizione. In questo modo la segnalazione porta a modificazioni nell’espressione genica, con effetti che possono manifestarsi su scale temporali più lunghe rispetto a quelle delle vie di segnalazione mediate da recettori di membrana.
Nel loro insieme, i diversi tipi di recettori consentono alle cellule di percepire un’ampia varietà di segnali chimici e fisici e di avviare risposte cellulari appropriate. La diversità dei recettori e delle loro vie di segnalazione rappresenta uno dei fattori chiave che permettono alle cellule di rispondere in modo altamente specifico agli stimoli ambientali e fisiologici.
Secondi messaggeri intracellulari
I secondi messaggeri intracellulari sono piccole molecole o ioni che svolgono un ruolo fondamentale nei processi di trasduzione del segnale cellulare, fungendo da intermediari tra l’attivazione dei recettori e la risposta biologica della cellula. Dopo che un ligando extracellulare si lega al proprio recettore, l’informazione viene trasmessa all’interno della cellula attraverso la produzione o il rilascio di queste molecole segnale, che propagano e amplificano il segnale intracellulare.
Uno degli aspetti più importanti dei secondi messaggeri è la loro capacità di diffondere rapidamente nel citoplasma, permettendo al segnale di raggiungere diversi bersagli molecolari in tempi molto brevi. In questo modo, l’attivazione di un numero limitato di recettori può generare una risposta cellulare intensa e coordinata.
Tra i principali secondi messaggeri intracellulari vi sono:
AMP ciclico (cAMP)

cGMP e cAMP
L’AMP ciclico è uno dei secondi messaggeri più studiati. Viene prodotto a partire dall’ATP dall’enzima adenilato ciclasi, spesso attivato da recettori accoppiati a proteine G. Il cAMP agisce principalmente attivando la proteina chinasi A (PKA), che fosforila numerose proteine bersaglio coinvolte nella regolazione del metabolismo, della trascrizione genica e della funzione cellulare.
GMP ciclico (cGMP)
Il GMP ciclico è sintetizzato a partire dal GTP dall’enzima guanilato ciclasi, che può essere attivata da diversi segnali, tra cui il monossido di azoto (NO). Il cGMP regola numerosi processi fisiologici, come rilassamento della muscolatura liscia, regolazione della pressione sanguigna e trasduzione del segnale visivo, agendo attraverso proteine effettrici come la proteina chinasi G (PKG) e alcuni canali ionici.
Calcio (Ca²⁺)
Lo ione calcio rappresenta un secondo messaggero estremamente versatile. In risposta a determinati segnali, la concentrazione citoplasmatica di Ca²⁺ può aumentare rapidamente grazie al rilascio dai depositi intracellulari, come il reticolo endoplasmatico, oppure all’ingresso attraverso canali di membrana. Il Ca²⁺ modula l’attività di numerose proteine regolatrici, tra cui calmodulina e diverse chinasi calcio-dipendenti, influenzando processi come contrazione muscolare, secrezione e metabolismo cellulare.
Inositolo trifosfato (IP₃) e diacilglicerolo (DAG)
Questi due secondi messaggeri derivano dall’idrolisi di fosfatidilinositolo 4,5-bisfosfato (PIP₂) ad opera dell’enzima fosfolipasi C. L’IP₃ diffonde nel citoplasma e stimola il rilascio di Ca²⁺ dal reticolo endoplasmatico, mentre il DAG rimane associato alla membrana plasmatica e contribuisce all’attivazione della proteina chinasi C (PKC). L’azione combinata di IP₃, DAG e Ca²⁺ rappresenta una delle principali vie di segnalazione intracellulare.
La concentrazione dei secondi messaggeri è finemente regolata da enzimi di sintesi e di degradazione, garantendo che il segnale sia transitorio e controllato. Ad esempio, le fosfodiesterasi degradano cAMP e cGMP, mentre specifiche pompe e canali ionici regolano i livelli intracellulari di Ca²⁺.
Grazie alla loro capacità di amplificare, diffondere e modulare i segnali intracellulari, i secondi messaggeri costituiscono elementi centrali nella regolazione di numerose funzioni biologiche e rappresentano importanti bersagli farmacologici in diversi ambiti della medicina.

