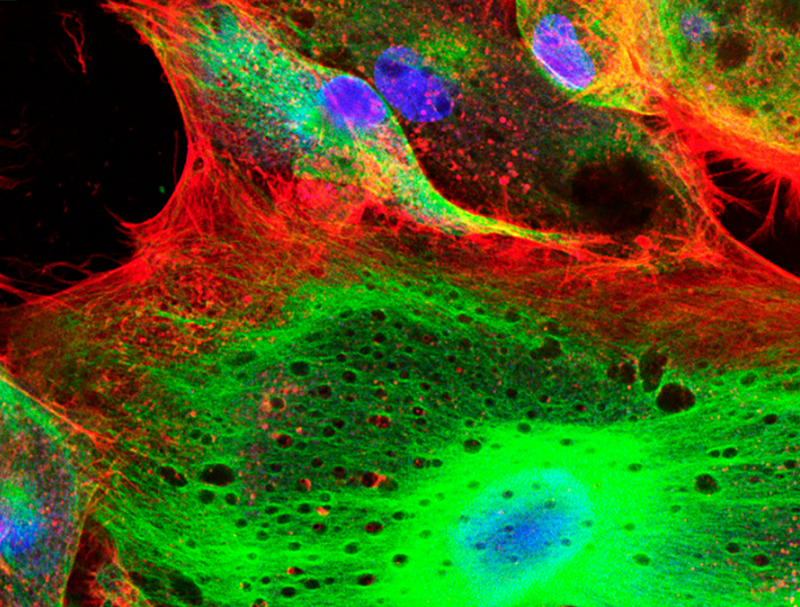
Le proteine fluorescenti (FP) rappresentano una delle scoperte più rivoluzionarie della biologia moderna. Si tratta di proteine capaci di produrre fluorescenza attraverso la formazione spontanea di un fluoroforo, una struttura molecolare che nasce da specifici residui di amminoacidi. Questa caratteristica consente di visualizzare processi molecolari, organelli e organismi viventi nelle loro condizioni naturali, senza necessità di trattamenti invasivi o di marcatori esterni.
Le proteine fluorescenti sono veri e propri cromofori naturali: sono in grado di assorbire l’energia di un fotone e di riemetterla come luce a una lunghezza d’onda diversa. Grazie a questa proprietà, i ricercatori possono osservare in tempo reale fenomeni complessi che avvengono all’interno delle cellule.
Un aspetto cruciale è che queste proteine presentano elevate rese quantiche, buona fotostabilità e un’ampia gamma di spettri di emissione. Oggi, infatti, le varianti naturali e ingegnerizzate coprono quasi l’intero spettro visibile, dal viola al rosso lontano, permettendo studi multicolore e la combinazione di diversi marcatori nello stesso esperimento.
La scoperta della proteina fluorescente verde (GFP), isolata negli anni ’60 dalla medusa Aequorea victoria, ha segnato una vera svolta. La GFP è in grado di emettere fluorescenza senza richiedere substrati o coenzimi aggiuntivi, se non l’ossigeno, caratteristica che l’ha resa estremamente versatile e facile da utilizzare. Da quel momento, la GFP e le sue varianti hanno aperto la strada a una nuova era della microscopia a fluorescenza, trasformando il modo in cui la biologia cellulare e molecolare vengono studiate.
Oggi si conoscono circa 250 proteine fluorescenti naturali, la maggior parte delle quali isolate da organismi marini come meduse, coralli e anemoni di mare. A queste si aggiungono le numerose versioni ingegnerizzate in laboratorio, ottimizzate per offrire maggiore luminosità, stabilità o specificità d’uso. L’enorme varietà disponibile consente di avere a disposizione una gamma completa di sonde fluorescenti, utili per seguire la struttura e la dinamica delle cellule viventi con un dettaglio senza precedenti.
Le applicazioni delle proteine fluorescenti sono oggi vastissime: dalla biologia vegetale, dove permettono di comprendere meglio la funzione delle cellule, alla medicina, in cui aprono nuove prospettive nello studio delle malattie e nello sviluppo di terapie innovative. In pochi decenni, queste proteine sono passate dall’essere una curiosità naturale a diventare uno degli strumenti più potenti della ricerca scientifica.
Origine e scoperta delle proteine fluorescenti
Le proteine fluorescenti si distinguono per la capacità di formare spontaneamente un cromoforo, acquisendo così l’intrinseca proprietà di emettere luce senza necessità di substrati, cofattori o gruppi prostetici. Questa peculiarità le rende strumenti biologici unici e versatili.
In natura, numerosi invertebrati marini mostrano una sorprendente varietà di fluorescenza e colorazioni visibili. Una parte di questi effetti è dovuta proprio a una famiglia crescente di proteine intrinsecamente fluorescenti, i cui geni sono stati isolati in diversi organismi. Tra i più noti figurano i celenterati, sia idrozoi come Aequorea, Obelia e Phialidium, sia antozoi come Anemonia, Discosoma e Renilla.
La GFP: la proteina che ha rivoluzionato la biologia
Tra tutte le proteine fluorescenti, la più celebre e studiata è la proteina fluorescente verde (GFP), isolata dalla medusa Aequorea victoria. La sua storia ha inizio nel 1962, quando fu identificata come proteina compagna dell’aequorina, una proteina chemiluminescente che emette luce blu. La GFP, quando eccitata con raggi ultravioletti, mostrava invece una fluorescenza verde brillante. Poco dopo fu pubblicato il suo primo spettro di emissione, che ne sancì l’interesse scientifico.
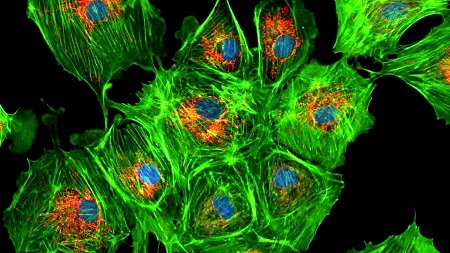
proteine fluorescente verde
Nonostante queste prime osservazioni, occorsero circa vent’anni di progressi tecnologici nella biologia molecolare e cellulare per chiarire la struttura primaria della GFP e comprenderne a fondo il funzionamento. Una svolta cruciale arrivò quando si dimostrò che il gene della GFP poteva essere espresso in organismi molto distanti dalle meduse, mantenendo intatte le sue proprietà fluorescenti. Questo risultato aprì la strada al suo impiego come marcatore universale di espressione genica.
Varianti e nuove scoperte
A partire dagli anni ’90, la GFP è stata oggetto di intense attività di clonazione e mutagenesi, che hanno portato allo sviluppo di numerose varianti ingegnerizzate. Queste versioni migliorate si distinguevano per la luminosità, la stabilità e i diversi colori di emissione, che spaziano dal blu al ciano, dal verde al giallo.
Parallelamente, furono identificate nuove proteine fluorescenti naturali in coralli non bioluminescenti e in anemoni di mare. Queste scoperte non solo arricchirono lo spettro di colori disponibili, ma dimostrarono che motivi proteici simili sono presenti in un’ampia gamma di organismi marini, ampliando enormemente le potenzialità della ricerca.
Impatto nella biologia cellulare e nella biotecnologia
Negli ultimi decenni, le proteine fluorescenti hanno inaugurato una nuova era nella biologia cellulare. Grazie alle tecniche di clonazione molecolare, esse possono essere fuse a proteine bersaglio e introdotte in cellule viventi, permettendo di osservare i processi biologici in tempo reale con la microscopia a fluorescenza.
Le applicazioni sono vastissime:
-Reporter di regolazione trascrizionale, per monitorare l’attività genica.
-Marcatori di organelli e strutture subcellulari, per seguirne localizzazione e dinamica.
Proteine di fusione, utili per studiare motilità, traffico intracellulare e interazioni molecolari.
Sono stati inoltre sviluppati biosensori fluorescenti capaci di rilevare fenomeni intracellulari complessi, come variazioni di pH, concentrazioni ioniche, attività enzimatiche, apoptosi e segnali elettrici. Questi biosensori, veicolati attraverso promotori selettivi e segnali di targeting, possono essere espressi in tessuti, tipi cellulari o compartimenti subcellulari specifici, fornendo un livello di precisione senza precedenti nello studio della fisiologia cellulare.
Meccanismo di fluorescenza
Il cuore del fenomeno fluorescente risiede nel cromoforo, una struttura chimica che si forma autocataliticamente all’interno della proteina a partire da specifici residui amminoacidici. Questo processo non richiede enzimi esterni né cofattori aggiuntivi, ma avviene spontaneamente durante il ripiegamento della proteina. Nel caso della GFP, ad esempio, il cromoforo si origina grazie a una reazione intramolecolare che coinvolge tre amminoacidi consecutivi della catena polipeptidica.
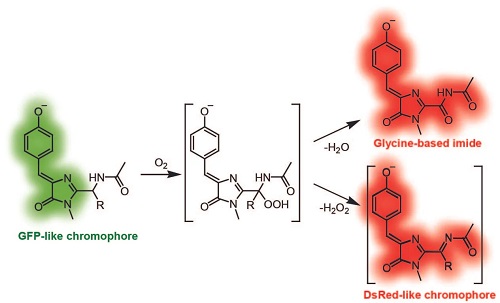
meccanismo
Una volta formato, il cromoforo è in grado di assorbire un fotone di luce a una determinata lunghezza d’onda, passando temporaneamente a uno stato eccitato ad alta energia. Dopo pochi nanosecondi, il cromoforo ritorna al suo stato fondamentale, riemettendo un fotone a energia più bassa e quindi a una lunghezza d’onda maggiore. È proprio questo processo che genera la caratteristica fluorescenza visibile.
Quando la proteina viene colpita da radiazione luminosa a una determinata lunghezza d’onda, il cromoforo assorbe l’energia e un elettrone viene promosso a uno stato elettronico eccitato. Questa condizione è instabile e, in un intervallo di tempo molto breve (dell’ordine di nanosecondi), l’elettrone ritorna allo stato fondamentale, rilasciando l’energia in eccesso sotto forma di fotone.
Il fotone emesso ha una lunghezza d’onda maggiore, e quindi un’energia più bassa, rispetto a quello assorbito: questo spiega il fenomeno noto come spostamento di Stokes. La differenza tra la radiazione assorbita e quella emessa è cruciale, perché permette di distinguere facilmente la fluorescenza del cromoforo dal segnale della luce incidente, rendendo queste proteine strumenti ideali per applicazioni di imaging biologico.
In termini schematici, il processo energetico può essere riassunto così:
-Assorbimento – il cromoforo assorbe un fotone (energia → stato eccitato).
-Rilassamento non radiativo – parte dell’energia viene dissipata come vibrazioni molecolari (calore).
-Emissione fluorescente – l’elettrone ritorna allo stato fondamentale, emettendo un fotone di minore energia.
Questo ciclo di eccitazione ed emissione è altamente riproducibile e può avvenire migliaia di volte senza che la proteina subisca danni immediati, anche se un uso prolungato può portare a fenomeni di fotobleaching, cioè perdita irreversibile della capacità fluorescente
L’ambiente proteico che circonda il cromoforo svolge un ruolo cruciale: la struttura tridimensionale a barile β (beta-barrel), tipica della GFP e delle sue varianti, protegge il cromoforo dall’ambiente esterno, garantendone la stabilità chimica e fotofisica. Questa particolare architettura è fondamentale per mantenere l’efficienza della fluorescenza e la resistenza alla fotodegradazione.
La variazione del colore emesso dipende da piccoli cambiamenti nella struttura del cromoforo o nell’ambiente amminoacidico che lo circonda. È grazie a questo principio che, mediante mutagenesi mirata e selezione di varianti naturali, i ricercatori hanno sviluppato una vasta gamma di proteine fluorescenti, capaci di coprire l’intero spettro della luce visibile e persino oltre, nel vicino infrarosso.
Tipi di proteine fluorescenti
A partire dalla GFP di Aequorea victoria, numerose varianti sono state ottenute tramite mutagenesi mirata o casuale, portando alla creazione di una vera e propria “tavolozza” di proteine fluorescenti con emissioni che coprono quasi tutto lo spettro visibile. Tra le principali si distinguono:
Proteine fluorescenti blu (BFP) – Le BFP sono isoforme mutanti della GFP, ottenute sostituendo l’amminoacido tirosina in posizione 66 con istidina. Questa modifica inserisce un gruppo imidazolico nel cromoforo, provocando uno spostamento dei picchi di eccitazione ed emissione verso lunghezze d’onda più corte. Tuttavia, queste proteine soffrono ancora di bassa resa quantica e di un’elevata tendenza al fotobleaching, che ne limita l’uso sperimentale rispetto ad altre varianti.
Proteine fluorescenti ciano (CFP) – Le CFP derivano da una mutazione progettata razionalmente della GFP, in cui la tirosina 66 viene sostituita con triptofano. Questa sostituzione sposta i massimi di eccitazione ed emissione rispettivamente a 436 e 476 nm, conferendo una tipica fluorescenza blu-verde. Le prime CFP risultavano meno brillanti della GFP originale, ma grazie a successive mutazioni sono state ottenute versioni migliorate, come l’Enhanced CFP (ECFP), sebbene la loro intensità rimanga relativamente debole.
Proteine fluorescenti gialle (YFP) – Le YFP sono state sviluppate introducendo mutazioni mirate nelle posizioni 65 e 203 del cromoforo della GFP. Questi cambiamenti hanno permesso di ottenere emissioni spostate verso il giallo, rendendo possibile la realizzazione di esperimenti di doppia etichettatura e applicazioni basate sul trasferimento di energia per risonanza di fluorescenza (FRET). Le YFP hanno trovato grande diffusione proprio per la loro complementarità con altre proteine fluorescenti.
Proteine fluorescenti rosse (RFP) – A differenza delle varianti blu, ciano e gialle, che derivano tutte dalla GFP, le RFP hanno origine distinta. La prima proteina di questa classe, DsRed, è stata isolata nel 1999 da specie di Anthozoa non bioluminescenti. L’emissione nella regione rossa dello spettro risultò subito di grande interesse, poiché offriva la possibilità di combinare segnali multipli senza sovrapposizioni con la GFP e le sue varianti. Da DsRed sono poi derivate numerose altre isoforme più brillanti e stabili, oggi ampiamente impiegate nella ricerca biologica.
Grazie a questa varietà cromatica, le proteine fluorescenti hanno ampliato enormemente il ventaglio di applicazioni in biologia cellulare e molecolare, consentendo studi di localizzazione, interazioni proteiche e dinamiche cellulari con una risoluzione sempre più precisa.
Proprietà delle proteine fluorescenti
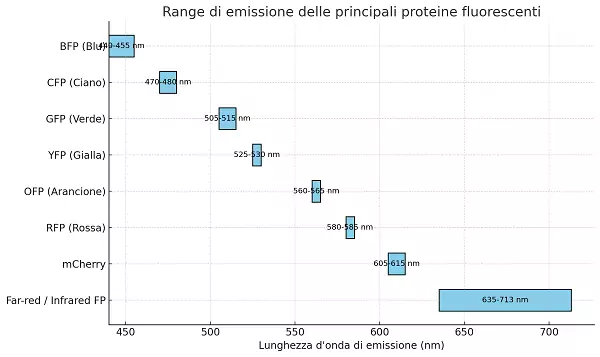
spettro di emissione
Le proteine fluorescenti disponibili oggi coprono quasi l’intero spettro visibile, grazie sia a mutagenesi mirata della GFP originaria di Aequorea victoria sia alla scoperta di nuovi cromofori naturali in coralli e antozoi. Questa vasta gamma cromatica ha permesso di sviluppare sonde ottiche sempre più versatili, con applicazioni che spaziano dalla semplice marcatura cellulare a complessi esperimenti di imaging multicolore e biosensing.
Tabella 1– Principali tipi di proteine fluorescenti
| Tipo | Origine/mutazione | Picco di eccitazione (nm) | Picco di emissione (nm) | Caratteristiche principali |
| GFP (Verde) | Naturale, Aequorea victoria |
395/475 |
509 |
Prima proteina fluorescente isolata, molto stabile, base di tutte le varianti |
| BFP (Blu) | GFP mutata: Tyr66 → His |
380 |
448 |
Fluorescenza debole, bassa resa quantica, rapido fotobleaching |
| CFP (Ciano) | GFP mutata: Tyr66 → Trp |
436 |
476 |
Colore blu-verde, meno brillante della GFP, versione ECFP leggermente migliorata |
| YFP (Gialla) | GFP mutata: posizioni 65 e 203 |
514 |
527 |
Brillante, adatta per FRET e imaging multicolore |
| RFP (Rossa) | Naturale: DsRed da coralli (Discosoma) |
558 |
583 |
Prima proteina rossa isolata, utile ma tende a formare tetrameri |
| mRFP1 | Variante monomerica di DsRed |
584 |
607 |
Migliorata rispetto a DsRed, monomerica, più adatta per fusioni proteiche |
| mCherry | Derivata da mRFP |
587 |
610 |
Alta fotostabilità, buona resa quantica, ampiamente usata in biologia cellulare |
| Arancioni (OFP) | Varianti ingegnerizzate da DsRed |
548 |
562 |
Colori intermedi, utilizzate per imaging multicolore |
| Far-red / Infrared FP | Varianti ingegnerizzate |
588–690 |
635–713 |
Penetrazione tissutale superiore, ideali per imaging in vivo nei mammiferi |
Le varianti moderne hanno ampliato notevolmente le possibilità sperimentali, superando molti limiti della GFP originaria: oggi è possibile combinare più fluorofori nello stesso campione per ottenere immagini ad alta risoluzione spaziale e temporale, aprendo la strada a una comprensione più fine e dinamica dei processi cellulari.
Applicazioni biotecnologiche e mediche
Le proteine fluorescenti hanno rivoluzionato la ricerca biologica e medica, diventando strumenti insostituibili per lo studio dei sistemi viventi. La loro capacità di fungere da marcatori genetici e molecolari consente di osservare in tempo reale i processi cellulari e molecolari senza la necessità di interventi invasivi. Grazie a queste proprietà, il loro impiego si è diffuso in numerosi campi, dalla biologia cellulare alla biomedicina, fino all’ingegneria dei biosensori.
Un primo ambito di grande importanza è rappresentato dalla visualizzazione della dinamica cellulare. Attraverso la fusione genica tra una proteina di interesse e una proteina fluorescente, è possibile monitorare la localizzazione subcellulare, il traffico di vescicole, la motilità cellulare e persino i cambiamenti morfologici associati a processi come divisione, differenziamento o apoptosi. Questo approccio ha permesso di chiarire meccanismi fondamentali in biologia, ad esempio lo studio delle vie di segnalazione intracellulare o dei complessi proteici dinamici.
Le FP hanno inoltre trovato largo impiego come biosensori intracellulari. Grazie a modifiche strutturali e alla progettazione razionale, sono stati sviluppati sensori fluorescenti capaci di rilevare parametri fisiologici quali pH, concentrazioni ioniche (Ca²⁺, Cl⁻), potenziale di membrana, attività enzimatiche o presenza di metaboliti specifici. Questi strumenti consentono di ottenere informazioni quantitative in tempo reale, con un livello di precisione prima inimmaginabile.
In campo medico, le proteine fluorescenti hanno aperto nuove prospettive per l’imaging in vivo. Varianti rosse e far-red, grazie alla maggiore penetrazione nei tessuti biologici e al minor autofluorescenza, sono oggi impiegate nello studio di tumori, metastasi e risposte terapeutiche in modelli animali. Queste tecniche hanno reso possibile seguire il comportamento delle cellule tumorali, l’angiogenesi o la distribuzione di farmaci nel tempo, con un approccio non invasivo e ad alta risoluzione.
Un ulteriore settore di rilievo è quello delle tecnologie di screening ad alto rendimento (high-throughput screening), dove le FP sono utilizzate come reporter di espressione genica, per monitorare l’attività di promotori o per valutare l’efficacia di farmaci candidati. Analogamente, nell’ingegneria genetica e nella biotecnologia industriale, la fluorescenza è sfruttata per selezionare cellule geneticamente modificate o per ottimizzare processi produttivi.
Infine, in medicina rigenerativa e neuroscienze, le proteine fluorescenti hanno trovato applicazioni come traccianti neuronali e marcatori per la lineage tracing, permettendo di seguire il destino di cellule progenitrici e staminali all’interno dei tessuti. Ciò ha contribuito a nuove scoperte sulla plasticità neuronale e sulle possibilità di rigenerazione cellulare.
In sintesi, le proteine fluorescenti si configurano oggi come strumenti versatili e indispensabili: dalla ricerca di base alla clinica, dal monitoraggio molecolare al potenziale uso terapeutico, il loro contributo ha trasformato il modo in cui osserviamo e comprendiamo i processi vitali.
Vantaggi rispetto ai coloranti tradizionali
L’introduzione delle proteine fluorescenti ha segnato un punto di svolta rispetto all’uso dei coloranti fluorescenti tradizionali (come la fluoresceina o la rodamina), che per decenni hanno rappresentato gli strumenti principali nell’imaging biologico. La differenza fondamentale risiede nel fatto che le FP sono geneticamente codificate, e questo consente di esprimerle direttamente all’interno delle cellule e degli organismi viventi, senza necessità di introdurre molecole esterne che potrebbero alterare l’ambiente cellulare.
Uno dei vantaggi più evidenti è la possibilità di marcare selettivamente specifiche proteine o strutture cellulari attraverso la fusione genica, garantendo un’osservazione mirata e precisa. I coloranti tradizionali, al contrario, spesso si distribuiscono in maniera aspecifica e richiedono procedure invasive di caricamento o fissazione delle cellule.
Un altro aspetto cruciale è la stabilità: molte proteine fluorescenti, in particolare le varianti ingegnerizzate moderne, mostrano una buona fotostabilità e possono essere osservate per lunghi periodi senza perdita significativa di segnale, condizione essenziale per lo studio dei processi cellulari dinamici. I coloranti chimici, invece, tendono a sbiadire rapidamente sotto esposizione prolungata alla luce (fotobleaching).
Le FP offrono inoltre una gamma cromatica molto ampia, estesa grazie a mutagenesi e scoperta di nuove varianti, che permette esperimenti di imaging multicolore e tecniche avanzate come il FRET (Förster Resonance Energy Transfer). I coloranti tradizionali, pur disponendo di varianti colorate, non raggiungono lo stesso livello di integrazione genetica e flessibilità sperimentale.
Dal punto di vista pratico, l’uso delle proteine fluorescenti elimina la necessità di trattamenti aggiuntivi: non servono lavaggi, incubazioni con sonde o cofattori, perché la cellula stessa diventa produttrice della proteina reporter. Questo rende le FP strumenti meno invasivi, più versatili e più riproducibili rispetto ai coloranti convenzionali.
In conclusione, mentre i coloranti chimici mantengono una loro utilità in determinati contesti, le proteine fluorescenti hanno aperto nuove possibilità di studio, trasformando l’imaging biologico in una disciplina capace di osservare la vita cellulare nel suo contesto naturale e in tempo reale.
Tabella 2 – Confronto tra proteine fluorescenti e coloranti tradizionali
| Caratteristica | Coloranti fluorescenti tradizionali | Proteine fluorescenti |
| Origine | Molecole chimiche esogene | Codificate geneticamente, prodotte dalla cellula |
| Utilizzo | Necessitano di incubazione, lavaggi o microiniezione | Espresse direttamente dalla cellula tramite fusione genica |
| Specificità | Spesso aspecifica, accumulo in compartimenti variabili | Targeting preciso a proteine, organelli o tessuti specifici |
| Invasività | Possono alterare l’ambiente cellulare | Minima, non richiedono manipolazioni aggiuntive |
| Gamma cromatica | Limitata, con alcune varianti disponibili | Ampia, dal blu al far-red/near-IR grazie a mutagenesi e nuove scoperte |
| Fotostabilità | Sbiadimento rapido (fotobleaching) | Varianti moderne con fotostabilità elevata |
| Applicazioni | Imaging fisso, analisi rapide | Imaging in vivo, time-lapse, FRET, biosensori dinamici |
Le proteine fluorescenti offrono quindi un vantaggio sostanziale in termini di versatilità, specificità e applicabilità rispetto ai coloranti tradizionali, rendendole lo strumento d’elezione per la biologia cellulare e molecolare moderna.
Sviluppi futuri
Le proteine fluorescenti hanno già rivoluzionato l’imaging biologico e medico, ma il loro potenziale non è ancora esaurito. Gli sviluppi futuri si stanno concentrando su diversi fronti, con l’obiettivo di superare i limiti ancora presenti e ampliare ulteriormente le applicazioni di queste straordinarie sonde molecolari.
Un primo ambito di ricerca riguarda il miglioramento delle proprietà fotofisiche. Nonostante i progressi ottenuti con varianti più brillanti e fotostabili, resta ancora la sfida di ridurre il fotobleaching e migliorare il rapporto segnale/rumore, specialmente per applicazioni di imaging a lungo termine. Parallelamente, gli scienziati stanno lavorando per aumentare la resa quantica e ottimizzare le lunghezze d’onda di eccitazione ed emissione, in modo da ottenere fluorofori sempre più adatti a diverse tecniche di microscopia avanzata.
Un secondo filone riguarda lo sviluppo di proteine capaci di operare in condizioni più complesse e fisiologicamente rilevanti. Le varianti far-red e near-infrared stanno diventando centrali per l’imaging nei tessuti profondi e negli organismi viventi, grazie alla maggiore penetrazione della luce e alla ridotta autofluorescenza. Si prevede che queste varianti avranno un impatto significativo nella ricerca preclinica e nelle applicazioni diagnostiche non invasive.
Sul piano tecnologico, un’area di grande interesse è l’ingegneria di FP sensibili a stimoli specifici, come variazioni di pH, tensione di membrana, redox, metaboliti o segnali secondari. Questi biosensori di nuova generazione permetteranno di monitorare con elevata precisione la fisiologia cellulare in tempo reale, aprendo prospettive in campi come la neurobiologia, la farmacologia e la medicina personalizzata.
Un ulteriore sviluppo atteso è l’integrazione delle FP con le tecniche di microscopia super-risolutiva (STORM, PALM, STED), che richiedono fluorofori altamente controllabili. La creazione di proteine fluorescenti fotocommutabili o fotoattivabili consentirà di spingersi oltre i limiti della risoluzione ottica tradizionale. Si offriranno così immagini dettagliate della dinamica molecolare a livello nanoscopico.
Infine, guardando al futuro più lontano, si intravedono potenziali applicazioni terapeutiche: proteine fluorescenti ingegnerizzate potrebbero essere utilizzate non solo come marcatori, ma anche come strumenti attivi nella terapia fotodinamica o come reporter per monitorare in tempo reale l’efficacia dei trattamenti in pazienti.
In sintesi, gli sviluppi futuri delle proteine fluorescenti mirano a renderle più brillanti, più stabili, più versatili e integrate con le nuove tecnologie di microscopia e biosensing. È probabile che, nei prossimi anni, esse diventino ancora più centrali non solo nella ricerca di base, ma anche nella diagnostica e nella medicina applicata. Contribuiranno così a una comprensione sempre più dettagliata e dinamica della vita cellulare.

